Di truyền phân tử
Thông tin thêm: Di truyền phân tử
Hoa của Arabidopsis thaliana, mô hình cây trồng quan trọng nhất và là người đầu tiên có trình tự bộ gen của nó
Trale cress, Arabidopsis thaliana, cây trồng đầu tiên có bộ gen của nó được sắp xếp, vẫn là mô hình cơ quan quan trọng nhất.
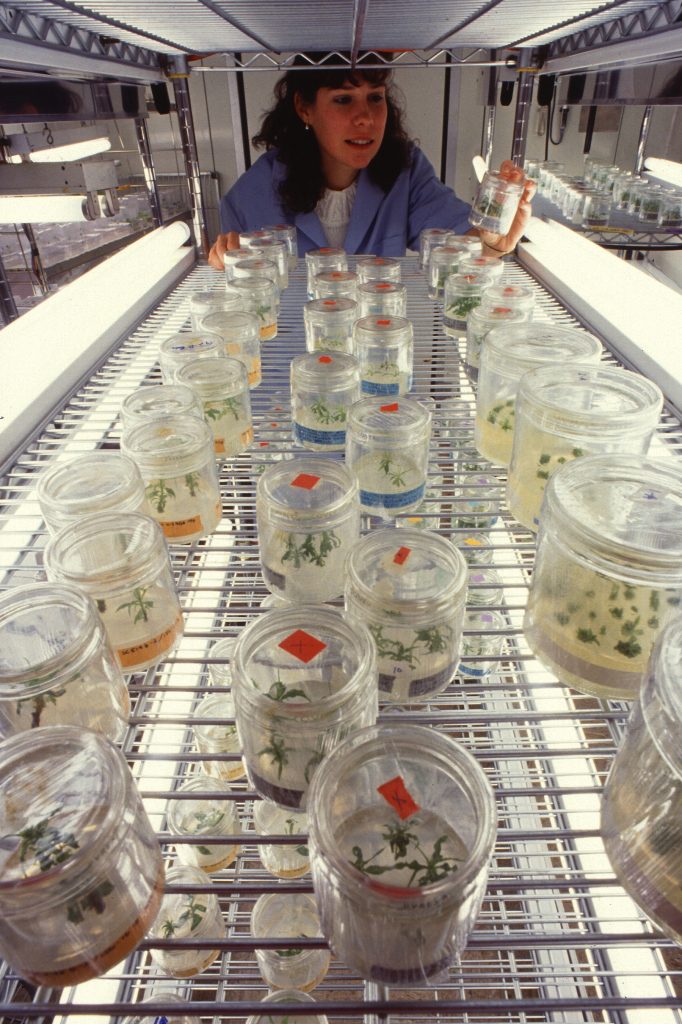
Một số lượng đáng kể các kiến thức mới về chức năng thực vật xuất phát từ các nghiên cứu về di truyền học phân tử của các cây mô hình như Thales cress, Arabidopsis thaliana, các loài cỏ dại trong họ Mustard (Brassicaceae) . Thông tin di truyền hoặc di truyền chứa trong các gen của loài này được mã hoá bởi khoảng 135 triệu cặp base DNA, tạo thành một trong những bộ gen nhỏ nhất trong số các cây có hoa. Arabidopsis là cây trồng đầu tiên được giải mã gen của nó, vào năm 2000. Sự sắp xếp của một số bộ gen tương đối nhỏ khác như gạo (Oryza sativa) và Brachypodium distachyon, đã làm cho chúng trở thành những mô hình quan trọng để hiểu được di truyền học, sinh học tế bào và phân tử của ngũ cốc, cỏ và lá đơn.
Các nhà máy mô hình như Arabidopsis thaliana được sử dụng để nghiên cứu sinh học phân tử của tế bào thực vật và lạp lục. Lý tưởng là các sinh vật này có bộ gen nhỏ được biết đến hoặc sắp xếp hoàn toàn, có tầm vóc nhỏ và thời gian ngắn. Ngô đã được sử dụng để nghiên cứu các cơ chế quang hợp và nạp phloem đường ở cây C4. Tảo lục mạch đơn bào Chlamydomonas reinhardtii, mặc dù không phải là phôi, chứa một chất chloroplast có màu xanh lục liên quan đến cây trồng trên đất liền, làm cho việc nghiên cứu trở nên hữu ích . Mạng lưới tảo Cyanidioschyzon merolae cũng đã được sử dụng để nghiên cứu một số chức năng của lạp lục cơ bản . Săn bần, đậu Hà Lan, đậu nành và rêu Physcomitrella patens thường được sử dụng để nghiên cứu sinh học tế bào thực vật.
Agrobacterium tumefaciens, một vi khuẩn rhizosphere rìa, có thể gắn vào tế bào thực vật và lây nhiễm chúng bằng plasmid gây ra bởi callus nhờ chuyển gen ngang, gây nhiễm callus gọi là bệnh vọp bì. Schell và Van Montagu (1977) đã đưa ra giả thuyết rằng plasmid có thể là một vector tự nhiên để đưa gen Nif chịu trách nhiệm về sự cố định đạm trong các rễ của rau và các loài thực vật khác . Ngày nay, sự biến đổi di truyền của plasmid Ti là một trong những kỹ thuật chính để đưa gen chuyển đổi sang cây trồng và tạo ra cây trồng biến đổi gen.
Thuốc ức chế vị giác
Bài chi tiết: Epigenetics
Epigenetics là nghiên cứu về sự thay đổi di truyền trong chức năng gen mà không thể giải thích được bằng những thay đổi trong dãy DNA cơ bản mà thay vào đó các gen của cơ quan cư xử (hoặc “thể hiện bản thân”) một cách khác nhau. Một ví dụ về thay đổi biểu sinh là đánh dấu các gen bằng phương pháp methyl hóa DNA, dù chúng có được biểu hiện hay không. Sự biểu hiện gen cũng có thể được kiểm soát bởi các protein phản ứng gắn với các vùng của DNA và ngăn không cho vùng mã ADN được biểu hiện. Các dấu hiệu biểu sinh có thể được thêm vào hoặc loại bỏ khỏi DNA trong giai đoạn phát triển của cây, và có trách nhiệm ví dụ về sự khác biệt giữa anthers, cánh hoa và lá bình thường, mặc dù chúng đều có cùng mã di truyền. Các thay đổi biểu sinh có thể là tạm thời hoặc có thể duy trì qua các phân chia tế bào liên tiếp trong suốt thời gian còn lại của tế bào. Một số thay đổi biểu sinh đã được chứng minh là di truyền, trong khi một số khác được đặt lại trong tế bào mầm.
Các thay đổi biểu sinh trong sinh học nhân chuẩn được dùng để điều chỉnh quá trình phân biệt tế bào. Trong quá trình hình thái học, các tế bào gốc totipotent trở thành các dòng tế bào đa năng khác nhau của phôi, từ đó trở thành các tế bào hoàn toàn khác biệt. Một tế bào trứng thụ tinh duy nhất, zygote, làm phát sinh nhiều loại tế bào thực vật khác nhau bao gồm nhu mô, thành phần mạch xylem, các ống sàng phloem, các tế bào bảo vệ của biểu bì, vv khi nó tiếp tục phân chia. Quá trình này kết quả từ sự kích hoạt biểu sinh của một số gen và sự ức chế của các gen khác.
Không giống như động vật, nhiều tế bào thực vật, đặc biệt là của nhu mô, không phân biệt giai đoạn cuối, vẫn là totipotent với khả năng tạo ra một cây trồng cá nhân mới. Các ngoại lệ bao gồm các tế bào được đánh giá cao, sclerenchyma và xylem đã chết khi trưởng thành, và các ống sàng phloem không có nhân. Mặc dù thực vật sử dụng nhiều cơ chế biểu sinh giống như động vật, chẳng hạn như tái tạo chất nhiễm sắc, một giả thuyết khác là cây trồng thiết lập mô hình biểu hiện gen bằng cách sử dụng thông tin vị trí từ môi trường xung quanh và các tế bào xung quanh để xác định số phận phát triển của chúng
Sự tiến hoá của thực vật
Bài chi tiết: Lịch sử tiến hóa của thực vật
màu sắc hình ảnh của một mặt cắt ngang của một hóa thạch thân của Rhynia gwynne-vaughanii, một nhà máy huyết mạch Devonian
Mặt cắt ngang của một thân cây hóa thạch của cây thủy ngân Devon Rhynia gwynne-vaughani
Các lục lạp của thực vật có một số điểm tương đồng sinh hóa, cấu trúc và di truyền để cyanobacteria (thường nhưng không đúng được gọi là “tảo xanh”) và được cho là có nguồn gốc từ một mối quan hệ cộng sinh nội bào cổ xưa giữa tổ tiên một tế bào eukaryote và cư dân cyanobacterium
Tảo là một nhóm polyphyletic và được đặt trong các bộ phận khác nhau, một số liên quan chặt chẽ đến thực vật hơn những loài khác. Có rất nhiều sự khác nhau giữa chúng với các tính năng như thành phần tế bào thành tế bào, hóa sinh, sắc tố, cấu trúc của lục lạp và trữ lượng dinh dưỡng. Bộ phân tảo Charophyta, chị em của bộ phận tảo xanh Chlorophyta, được coi là có chứa tổ tiên của thực vật. Loài Charophyceae Charophyteae và tiểu vương thực vật Embryophyta tạo thành nhóm thực vật đơn bào hoặc là Streptophytina.
Thực vật đất không mạch máu là các phôi mà không có các mô mạch mạch và xơ vữa. Chúng bao gồm rêu, liverwort và hornworts. thực vật có mạch Pteridophytic với xylem và phloem que đúng sao chép bằng cách nảy mầm bào tử vào gametophytes sống tự do phát triển Trong giai đoạn Silur và đa dạng hóa thành dòng Vài Trong thời gian cuối Devon Silur và sớm. Đại diện của lycopods đã tồn tại cho đến ngày nay. Đến cuối giai đoạn Devon, Một số nhóm, bao gồm lycopods, sphenophylls và progymnosperms, đã phát triển một cách độc lập “megaspory” – Were bào tử của họ về hai kích cỡ khác nhau, lớn hơn và megaspores bào tử nhỏ hơn. gametophytes giảm của họ phát triển từ megaspores giữ lại Trong các cơ quan bào tử-sản xuất (megasporangia) của bào tử, tình trạng này được gọi là endospory. Hạt giống bao gồm một megasporango nội bào bao quanh bởi một hoặc hai lớp vỏ bọc. Cây sporophyte non phát triển trong hạt, trong đó sự nảy mầm phân tách ra để giải phóng nó. Các cây hạt nhân sớm nhất được biết đến từ giai đoạn mới nhất của Devonian Famen. Sau khi quá trình tiến hóa của thói quen giống, cây giống đa dạng, làm phát sinh một số nhóm đã tuyệt chủng, bao gồm dương xỉ hạt giống, cũng như cây hạt trần và thực vật hạt kín hiện đại. Thú thực là “hạt trần” không được bao bọc hoàn toàn trong buồng trứng; đại diện hiện đại bao gồm cây Thông, cây xích lô, bạch quả, và Gnetales. Hạt đậu sinh ra các hạt giống nằm trong một cấu trúc như mỡ hoặc buồng trứng Nghiên cứu đang tiến hành về sự phát sinh loài phân tử của cây sống cho thấy rằng các hạt kín là một clade của chị em đối với thực vật hạt trần